Защо клетъчната енергия, а не просто храната определя метаболитното здраве
През последните години дискусията около метаболизма и инсулиновата резистентност често се свежда до спор между въглехидрати и мазнини. Тази редукция обаче пропуска най-фундаменталния въпрос: какво реално определя способността на клетките да използват енергията?
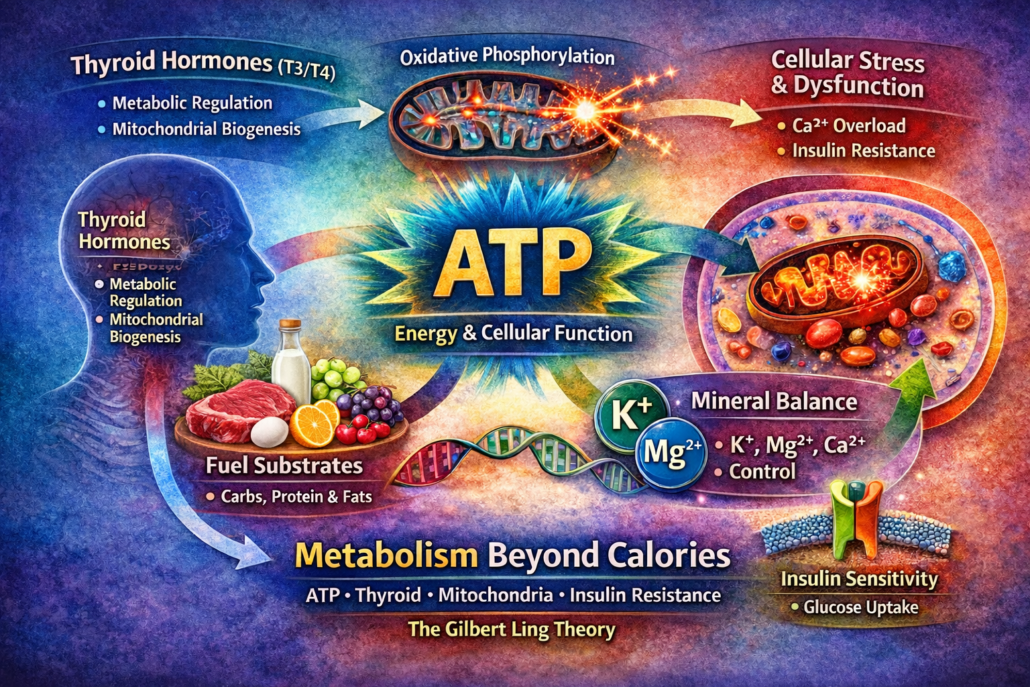
Теорията на физиолога Гилбърт Линг предлага по-дълбок биофизичен модел. Според неговата Association-Induction Hypothesis клетката функционира като интегрирана система от протеини, вода, минерали и аденозинтрифосфат (ATP). В този модел ATP не е просто източник на енергия, а структурен регулатор на клетъчната стабилност.
От тази перспектива метаболитните нарушения, включително инсулиновата резистентност, могат да бъдат разглеждани като резултат от клетъчна енергийна недостатъчност и минерална дестабилизация.
Клетката като енергийно-структурна система
Класическата клетъчна биология разглежда клетката като мембранно ограничена структура, в която йонните концентрации се поддържат чрез мембранни помпи и канали.
Линг оспорва този модел, като предлага, че основната регулация на клетъчната функция се осъществява чрез взаимодействието между:
- Клетъчните протеини
- Структурирана вода
- Минерални йони
- Аденозинтрифосфат (ATP)
Според него ATP не е просто енергийна валута, а регулатор на протеиновата конфигурация и клетъчната организация.
Когато нивата на ATP са високи, протеините поддържат специфична конформация, която позволява задържането на калий в клетката, поддържането на структурирана вода и оптималното функциониране на ензимните системи.
ATP – това е структурната валута на живота
Класическата биохимия описва ATP като универсална енергийна молекула. Линг обаче разширява тази концепция, като предполага, че ATP регулира конформацията на клетъчните протеини и поддържа структурираното състояние на клетъчната вода.
Когато ATP е достатъчен:
- Протеините запазват функционалната си структура
- Калият се задържа вътреклетъчно
- Натрият остава извън клетката
- Калциевият поток се контролира
- Ензимните реакции протичат ефективно
Когато ATP спадне хронично:
- Йонните градиенти се нарушават
- Калцият се натрупва в клетките
- Митохондриите се претоварват
- Възпалителните процеси се усилват
- Клетъчната чувствителност към инсулин намалява
Структурната вода и метаболитната ефективност
Клетъчната вода е структурирана среда, свързана с протеините. Тази структурирана вода улеснява ензимните реакции, транспорта на енергия и стабилността на клетъчните компоненти. При енергиен дефицит протеините губят способността си да поддържат тази структура, което намалява метаболитната ефективност и увеличава клетъчния стрес. Това не е вода, която се набавя външно, чрез хидратация, това е среда на клетката.
Биохимия на ATP синтеза и ролята на въглехидратите
Производството на ATP в митохондриите зависи от окислителното фосфорилиране – процес, при който електронният транспортен ланец създава протонен градиент, необходим за синтеза на ATP чрез ATP-синтазата.
Въглехидратите играят ключова роля в този процес, защото:
- Глюкозата осигурява пируват за цикъла на Кребс
- Пируватът подпомага генерирането на NADH и FADH₂
- Тези редуцирани коензими захранват електронния транспорт
Ограничаването на въглехидратите често води до повишено използване на мастни киселини и кетонни тела. Въпреки, че тези субстрати могат да бъдат използвани за енергия, те не винаги осигуряват същата ефективност на окислителния метаболизъм, особено в тъкани с висока зависимост от глюкозата като мозъка и нервната система.
Намаленото производство на ATP може да компрометира множество клетъчни процеси, включително поддържането на йонния баланс.
Минералната хомеостаза е основа на клетъчната функция
Калий – електрохимичният подпис на здрава клетка
Здравите клетки поддържат висока вътреклетъчна концентрация на калий. Това се осъществява чрез натрий-калиевата помпа, която използва значителна част от клетъчния ATP.
При енергиен дефицит:
- Калият напуска клетката
- Натрият навлиза вътреклетъчно
- Мембранният потенциал се нарушава
- Глюкозният транспорт се влошава
Магнезий – фундамент за синтез на ATP
ATP функционира основно като Mg-ATP комплекс. Магнезият участва в стотици ензимни реакции, включително синтеза на енергия и регулацията на калциевия транспорт.
Дефицитът на магнезий може да доведе до:
- Нарушена инсулинова сигнализация
- Повишен оксидативен стрес
- Увеличено клетъчно възпаление
Калций – универсален сигнал за клетъчен стрес
В нормални условия вътреклетъчният калций е строго контролиран. При спад на ATP калциевите помпи губят ефективност и калцият започва да се натрупва в клетките.
Последствията включват:
- Активиране на протеолитични ензими
- Митохондриална дисфункция
- Повишено производство на реактивни кислородни видове
- Ускорено клетъчно стареене
Щитовидната жлеза – много важен регулатор на митохондриалния капацитет
Тиреоидният хормон Т3 играе централна роля в метаболизма, като регулира:
- Митохондриалната биогенеза
- Активността на електронния транспортен ланец
- Експресията на гени, свързани с енергийния метаболизъм
- Клетъчния кислороден разход
При нисък свободен Т3:
- Митохондриалната ефективност намалява
- Производството на ATP се редуцира
- Клетъчната чувствителност към инсулин може да се влоши
Митохондриална динамика и ролята на ROS
Митохондриите постоянно се ремоделират чрез процеси на сливане и разделяне. Тази динамика позволява адаптация към метаболитните нужди и елиминиране на увредени органели.
Реактивните кислородни видове (ROS) имат двойна роля. В умерени количества те действат като сигнал за клетъчна адаптация, но при хронично повишение могат да увредят митохондриалната структура и да усилят възпалението.
Инсулиновата резистентност като биоенергетичен проблем
Класическият модел разглежда инсулиновата резистентност като дефект в рецепторната сигнализация. Биоенергетичният модел предлага по-интегрирано обяснение.
Когато клетките са енергийно компрометирани:
- Йонният баланс се нарушава
- Калциевият поток се увеличава
- Митохондриалната функция се влошава
- Инсулиновият сигнал става неефективен
Допълнително, натрупването на липидни метаболити като диацилглицероли и церамиди може да блокира инсулиновата сигнализация и да засили метаболитната дисфункция.
Как практически се възстановява клетъчната биоенергетика
Ефективният метаболитен модел включва няколко фази:
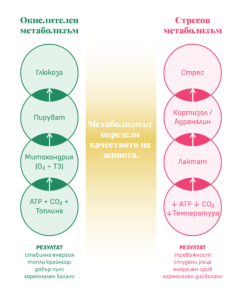
Фаза 1– възстановяване на енергийния поток чрез повишаване на въглехидратния прием, намаляване на кортизола, намаляване на адреналина, калории спрямо разхода без дефицити, запълване на гликогена;
Фаза 2-митохондриална адаптация чрез силови тренировки и повече движение навън, подобряване на инсулиновата чувствителност, увеличаване на АТР;
Фаза 3-метаболитна гъвкавост чрез ефективно използване на мазнини, стабилна хормонална среда, добър толеранс към дефицит;
Общо за трите фази е :
- Стабилен енергиен прием
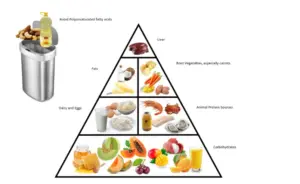
- Адекватен въглехидратен прием според физическата активност
- Достатъчен протеин за структурна и ензимна поддръжка
- Балансиран прием на мазнини
- Оптимален минерален статус
- Силови тренировки
- Управление на хроничния стрес и съня
Заключение: Метаболизмът като интегрирана клетъчна система
Метаболитното здраве не може да бъде сведено до калориен баланс или до елиминиране на определен макронутриент. Гилбърт Линг предлага модел, в който клетъчната енергия, минералната хомеостаза и структурната стабилност определят способността на организма да регулира телесното тегло, инсулиновата чувствителност и възпалението.
От тази перспектива хроничният енергиен дефицит – независимо от хранителния модел – може да доведе до спад в производството на ATP, нарушаване на йонния баланс и клетъчна дезорганизация. Възстановяването на метаболизма изисква повишаване на енергийния поток, подобряване на митохондриалната функция и поддържане на минералния баланс.
Инсулиновата резистентност в този контекст не е просто резултат от прекомерен прием на въглехидрати, а отражение на несъответствие между горивния поток и клетъчния капацитет за неговото използване.
Когато тези системи работят синхронно, инсулиновата чувствителност се възстановява, възпалението намалява и тялото естествено става по-ефективно в регулирането на телесния състав.
Референции
Ling, G.N. (1962). A Physical Theory of the Living State.
Ling, G.N. (1984). In Search of the Physical Basis of Life.
Ling, G.N. (2001). Life at the Cell and Below-Cell Level.
Ling, G.N. (2007). History of the Association-Induction Hypothesis.
Skou, J.C. (1957). The influence of some cations on an adenosine triphosphatase from peripheral nerves.
Petersen, K.F., & Shulman, G.I. (2018). Mechanisms of Insulin Action and Insulin Resistance.
Barbagallo, M., & Dominguez, L.J. (2015). Magnesium and type 2 diabetes.
Orrenius, S., Zhivotovsky, B., & Nicotera, P. (2003). Regulation of cell death: calcium–apoptosis link.
Youle, R.J., & van der Bliek, A.M. (2012). Mitochondrial fission, fusion, and stress.
Sena, L.A., & Chandel, N.S. (2012). Physiological roles of mitochondrial reactive oxygen species.
Samuel, V.T., & Shulman, G.I. (2012). Mechanisms for insulin resistance: common threads and missing links.